Dallimet në madhësi midis kanarinave, fincheve dhe aleatëve mund të shpjegojnë evolucionin e ndërlidhur të këngës dhe ngjyrës
Dallimet në madhësi midis kanarinave, fincheve dhe aleatëve mund të shpjegojnë evolucionin e ndërlidhur të këngës dhe ngjyrës
Gonçalo C. Cardoso ,João M. Abreu dhe Paulo G. Mota
Publikuar:ne Biblioteken Royal Society 28 gusht 2024 https://doi.org/10.1098/rspb.2024.1060
Abstrakt
Sinjalet seksuale të tilla si zbukurimet me ngjyra dhe kënga e shpendëve evoluojnë në mënyrë të pavarur nga njëra-tjetra në disa grupe, dhe ndër të tjera ato evoluojnë pozitivisht ose negativisht. Ne rrallë e dimë pse ndodh ose nuk ndodh evolucioni i ndërlidhur. Këtu, ne tregojmë evolucionin e korreluar pozitivisht midis ngjyrës së pendës dhe performancës motorike të këngës midis kanarinave, finche dhe aleatëve, të lidhur me dallimet e specieve në madhësinë e trupit. Kur kontrollohej përmasat e trupit, modeli i evolucionit të ndërlidhur midis performancës së këngës dhe ngjyrës u zhduk. Diversiteti i rrokjeve nuk lidhej aq fort me madhësinë dhe nuk evoluoi në një mënyrë të ndërlidhur me ngjyrën. Ne argumentojmë se evolucioni i korreluar midis këngës dhe ngjyrës u ndërmjetësua nga madhësia e madhe që kufizon performancën motorike të këngës, ndoshta për shkak të kufizimeve në shpejtësinë e lëvizjes së sqepave më të rëndë, dhe nga speciet më të mëdha që kanë ngjyrë më pak të ngopur të pendës, ndoshta për shkak të tipareve të historisë së jetës së zogjve më të mëdhenj (p.sh., jetëgjatësia, çiftet e qëndrueshme) që kontribuojnë në përzgjedhjen më të dobët seksuale. Rezultatet janë në përputhje me hipotezën se evolucioni i korreluar midis sinjaleve seksuale ndikohet nga mënyra se si, në një kladë, presionet selektive dhe kufizimet që ndikojnë në secilin lloj sinjali ndodh të jenë të shpërndara bashkërisht nëpër specie. Një kontigjencë e tillë ndihmon në shpjegimin e diversitetit në modelet specifike të kladeve të evolucionit të korreluar midis sinjaleve seksuale..
1. Hyrje
Ekziston një histori e gjatë e pyetjes nëse llojet e ndryshme të sinjaleve seksuale evoluojnë në një mënyrë të ndërlidhur, që daton që nga Darvini, i cili vuri në dukje se speciet e zbehta të shpendëve ndonjëherë do të kishin këngë jashtëzakonisht të përpunuara, ndërsa speciet shumëngjyrëshe mund të kishin këngë të thjeshta. Kompetencat evolucionare midis përpunimit të llojeve të ndryshme të sinjaleve seksuale janë hipotezuar nëse, për shembull, kufizimi i burimeve pengon investimin në më shumë se një lloj sinjali, nëse evolucioni i një sinjali të përpunuar ul dobinë e një sinjali tjetër lloji ose nëse kufizimet që ndikojnë në një modalitet sinjali rrisin përzgjedhjen në një modalitet tjetër sinjali. Kombinimi midis përpunimit të llojeve të ndryshme të sinjaleve seksuale shpesh quhet hipoteza e transferimit. Përndryshe, dallimet e specieve në forcën e përzgjedhjes seksuale mund të shkaktojnë evolucion të korreluar pozitivisht midis llojeve të ndryshme të sinjaleve seksuale. Evolucioni i korreluar pozitivisht do të ishte për shkak se speciet nën përzgjedhje të dobët seksuale kanë sinjale të thjeshta dhe speciet nën përzgjedhje të fortë evoluojnë nëpër modalitete shqisore sinjale më të përpunuara (p.sh. vizuale, akustike).
Hulumtimet empirike kanë gjetur modele të ndryshme të evolucionit të ndërlidhur midis sinjaleve seksuale dhe nuk është e qartë pse këto modele ndryshojnë nga një kladë në tjetrën. Shumica e testeve krahasuese përdorën zbukurime me ngjyra dhe sinjale akustike te zogjtë. Ndërsa në disa klada ka prova për evolucionin e lidhur pozitivisht të zbukurimeve me ngjyra dhe përpunimin e sinjaleve akustike në të tjera mund të ketë ndodhur evolucion i ndërlidhur negativisht , dhe në të tjera, evolucioni i tyre ishte kryesisht i pavarur. Gomes et al. zbuloi gjithashtu se, në finche estrildid, sinjalet vizuale dhe akustike kanë evoluar në lidhje me parashikues të ndryshëm ekologjikë ose socialë (p.sh. performanca e këngës me investim në riprodhim, zbukurimi i ngjyrave me shoqërimin). Prandaj, ata sugjeruan që nëse sinjale të ndryshme evoluojnë apo jo në një mënyrë të ndërlidhur mund të varet nga mënyra se si, në një kladë të caktuar, presionet dhe kufizimet selektive që ndikojnë në çdo lloj sinjali ndodh të shpërndahen nëpër specie bashkë.
Për të vlerësuar pse sinjale të ndryshme mund të evoluojnë në një mënyrë të ndërlidhur, ne testuam se si madhësia e trupit dhe lloji i habitatit ndikojnë në evolucionin e këngës dhe ngjyrës tek kanarinat, fincat dhe aleatët. Madhësia e trupit dhe lloji i habitatit mund të ndikojnë në mënyrë të besueshme në evolucionin e sinjaleve akustike dhe vizuale. Madhësia e trupit ose e faturës mund, për shembull, të pengojë performancën e vokalizimeve të moduluara shpejt . Për më tepër, midis zogjve në përgjithësi, ndryshimet në madhësi midis specieve shoqërohen gjithashtu me historinë e jetës dhe tiparet e sjelljes që mund të ndikojnë në përzgjedhjen seksuale (p.sh. jetëgjatësia , madhësia relative e trurit . Gjithashtu, habitatet me bimësi të dendur mund, për shembull, të fshehin sinjalet vizuale, të ndryshojnë mjedisin e dritës në të cilin ato sinjale perceptohen ose të shkaktojnë përthyerje të zërit që degradon strukturën kohore të sinjaleve akustike. Në varësi të efekteve të madhësisë së trupit ose habitatit në evolucionin e sinjalit, dhe nga mënyra se si madhësia e trupit ose habitati shpërndahen nëpër specie, ato mund të ndikojnë në modelet e evolucionit të ndërlidhur midis sinjaleve.
Dallimet e specieve në këngën dhe zbukurimet e ngjyrave ishin karakterizuar më parë për kanarinat, finche dhe aleatët, dhe provat janë grumbulluar gjithashtu për përzgjedhjen seksuale në këngën dhe ngjyrën e tyre (shqyrtuar në. Këto lloje ndryshojnë në kompleksitetin e këngës, nga këngëtarët e vazhdueshëm me një larmi të madhe llojesh rrokjesh në secilën këngë, tek speciet me vetëm një ose disa lloje rrokjesh për këngë. Ato ndryshojnë gjithashtu në performancën motorike të këngës, me speciet më të mëdha që këndojnë trill me performancë të ulët (dmth. me ritme të ngadalta trillimi dhe/ose gjerësi bande të ngushtë të frekuencës) dhe specie më të vogla që këndojnë trill me performancë të ulët ose të lartë.
Kjo bashkë-shpërndarje në formë trekëndëshi e madhësisë së trupit dhe performancës motorike të këngës tregon një kufi të sipërm të performancës së këngës që zvogëlohet me rritjen e madhësisë. Zbukurimet me ngjyra me bazë karotenoidet janë shumë të zakonshme në gjoksin e të afërmve të kanarinave, duke treguar dikromatizëm seksual të njëanshëm ndaj mashkullit, tipik për sinjalet seksuale, dhe speciet ndryshojnë shumë në ngopjen e ngjyrës së gjoksit (nga e bardha në ngjyrë të gjallë), por më pak në nuancë (e verdhë në shumicën specie dhe rrallë vetëm e kuqe. Ngjyra e bazuar në karotenoid është gjithashtu e zakonshme në pjesën e pasme në goldfinch, por ngjyra e goldfinchave është më e ngjashme midis gjinive dhe nuk tregon dikromatizëm seksual të njëanshëm ndaj mashkullit, duke sugjeruar funksione jo-seksuale. Ngopja e ngjyrës së gjoksit lejon kështu një krahasim objektiv të zbukurimeve homologe midis kanarinave, finche dhe aleatëve, pa pasur nevojë të përdoret një indeks indirekt si dikromatizmi seksual, i cili nuk është aq lehtë i interpretueshëm. Prandaj, ne përdorim diversitetin e rrokjeve brenda këngës dhe performancën motorike të trilleve për të përcaktuar sasinë e përpunimit të këngës dhe ngopjen e ngjyrës së gjoksit mashkullor për të përcaktuar sasinë e zbukurimeve me ngjyra. Ne testojmë për mundësinë e evolucionit të ndërlidhur midis këtyre sinjaleve dhe vlerësojmë se si madhësia e trupit ose habitati ndikojnë në modelin e tyre të evolucionit të ndërlidhur.
2. Metodat
Ne përdorëm të dhëna për diversitetin e rrokjeve të këngëve dhe performancën motorike të kanarinave, finche dhe aleatëve nga, dhe nga të dhëna për ngopjen e ngjyrës së gjoksit . Këta artikuj të mëparshëm përpiluan të dhëna për këngën plus ngjyrën dhe informacionin filogjenetik molekular, për 35 specie në gjininë Acanthis ( A. flammea ), Carduelis ( C. carduelis, C. citrinella ), Chloris ( C. chloris ), Crithagra ( C. albogularis, C. atrogularis, C. burtoni, C. capistrata, C. citrinelloides, C. dorsostriata, C. flaviventris, C. gularis, C. leucopygia, C. mennelli, C. mozambica, C. rufobrunnea, C. striolata, C. sulphurata, C. totta ), Linaria ( L. cannabina ), Serinus ( S. alario, S. canaria, S. canicollis, S. pusillus, S. serinus ) dhe Spinus ( S. atratus, S. barbatus, S. magellanicus, S. pinus, S. psaltria, S. spinescens, S. spinus, S. tristis, S. xanthogastrus, S. yarrellii ). Këto specie më parë ishin klasifikuar si Serinus (kanarinat dhe aleatët) dhe Carduelis (finche dhe aleatët), përpara zbulimit te Serinus dhe Carduelis ishin gjini polifiletike në një kladë të vetme . Ato përfaqësojnë 51% të specieve të klasifikuara më parë si Serinus ose Carduelis . Pjesa e mbetur në Arkivin Kombëtar të Tingujve të Bibliotekës Britanike nuk kishte as regjistrime këngësh ose mantelin veshës në Muzeun e Historisë Natyrore të Londrës.
Metodat për nxjerrjen e diversitetit të rrokjeve dhe performancës motorike janë të detajuara diku tjetër. Shkurtimisht, kemi analizuar deri në pesë regjistrime këngësh nga Arkivi Kombëtar i Tingujve të Bibliotekës Britanike për çdo specie, të përzgjedhura në bazë të cilësisë së zërit; spektrogramet përfaqësuese për çdo specie janë në. Ne përdorëm spektrograme në Avisoft-SASLab Pro (Avisoft Bioacoustics, Berlin, Gjermani) për të identifikuar se cilat rrokje (d.m.th. elementë të tingullit ose grupe të ngushta elementësh të ndarë përkohësisht nga të tjerët brenda këngës) u përsëritën ose nuk u përsëritën për të formuar trill dhe u vlerësuan brenda- diversiteti i rrokjeve të këngës si numri mesatar i rrokjeve për këngë shumëfishuar proporcionin e rrokjeve që nuk përsëriten. Në trill (p.sh. përsëritje të së njëjtës rrokje), ne përdorëm mjete matëse automatike të Avisoft-SASLab Pro për të ndarë rrokjet, për të matur kohëzgjatjen e tyre dhe për të matur frekuencën maksimale dhe minimale (frekuencat në të cilat amplituda ra nën -21 dB nga amplituda e pikut në rrokja). Nga këto të dhëna, ne llogaritëm shkallën e trillit të çdo trill dhe llogaritëm gjerësinë e brezit të frekuencës së rrokjeve të trilluara në një shkallë raporti për të shmangur mbivlerësimin e gjerësisë së brezit të trilleve duke përdorur frekuenca më të larta të zërit në krahasim me ato në frekuenca më të ulëta. Ne përdorëm regresionin e dyfishtë kuantile për të llogaritur devijimin vokal të dyfishtë kuantile (më tej, devijimi vokal DQ) për çdo trill, për të vlerësuar performancën e motorit në lidhje me shkëmbimin midis këndimit me shpejtësi të shpejtë trillimi ose gjerësi të gjerë të frekuencës (shih figurën 1 a prej. Ne vlerësuam devijimin vokal të DQ për çdo trill në çdo regjistrim dhe më pas për çdo regjistrim të secilës specie, për të marrë një vlerë të performancës motorike të këngës në nivel specie. Për Serinus totta , ne nuk kishim të dhëna për devijimin vokal të DQ sepse nuk kishte trill në regjistrimet e tij, dhe për Carduelis spinescens , vlera e devijimit vokal DQ ishte një dallim i qartë. Madhësia e kampionit për analizat që përfshijnë devijimin vokal të DQ ishte 33 dhe jo 35 lloje.
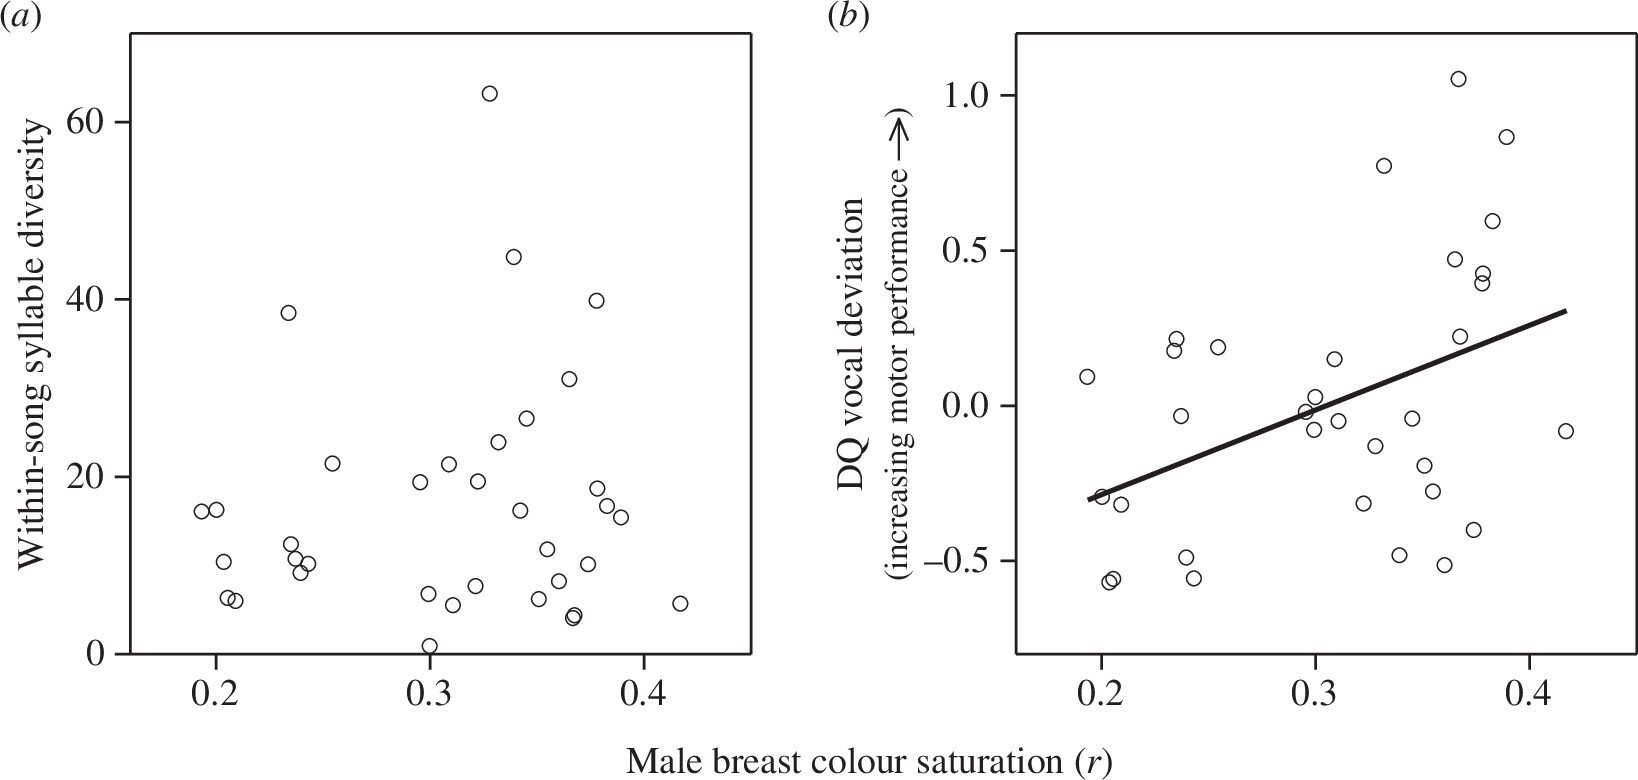
Figura 1. Skaterplote për marrëdhëniet ndërmjet ( a ) diversitetit të rrokjeve brenda këngës ose ( b ) performancës motorike të trillit (devijimi vokal DQ) dhe ngopjes së ngjyrave në pendën e gjirit. Vija e fortë tregon lidhje statistikisht të rëndësishme.
Metodat për matjet e ngjyrave janë të detajuara diku tjetër. Shkurtimisht, ne përdorëm spektrofotometrinë e reflektimit në deri në tre lëkura mashkullore për secilën specie në Muzeun e Historisë Natyrore të Londrës për të matur pjesën e tyre me ngjyrë më të gjallë të pendës në gjoks. Ne llogaritëm ngopjen e ngjyrave si distancë nga qendra akromatike e një hapësire ngjyrash tetraedrale të përcaktuar nga një model i sistemit vizual UV të shpendëve, ku koordinatat janë stimulimi relativ i katër llojeve të konit të shpendëve. Kjo masë e ngopjes ( r ) përcakton ngjyrën e perceptuar të ngjyrës, pavarësisht nga shkëlqimi ose nuanca. Të dhënat për llojin e tipareve të këngës dhe ngopjes së ngjyrave janë në materialin elektronik plotësues.
Ne përdorëm filogjene molekulare të bëra nga Cardoso et al , bazuar në sekuencat e ADN-së për deri në 14 lokuse dhe të konkluduara me modelet Bayesian të evolucionit molekular. Një grup prej 1000 pemësh pas djegies u nxorën dhe u rrënjosën për të marrë kronograme. Metodat e hollësishme janë në Cardoso et al . ,dhe 1000 kronogramet me rrënjë janë në materialin e tyre elektronik plotësues.
Ne testuam nëse kënga dhe ngjyra evoluan në një mënyrë të ndërlidhur me regresionet filogjenetike të përgjithësuar të katrorit më të vogël (PGLS) të diversitetit të rrokjeve ose devijimit vokal DQ në ngopjen e ngjyrës së gjirit mashkullor. Ne përdorëm këngën si një variabël të varur dhe ngjyrën si një parashikues, sepse ngopja e ngjyrave mashkullore u tregua se kishte një sinjal të lartë filogjenetik (λ > 0.99, ndërsa këto tipare të këngës tregojnë evolucion më labile. Këtu, si në të gjitha analizat e mëvonshme, ne përdorëm funksionin pgls në kaperin e paketës R (v. 1.0.1, duke vlerësuar parametrin λ të modelit PGLS për të rregulluar korrigjimin filogjenetik në shkallën e sinjalit filogjenetik në tipar shoqatat. Të gjitha modelet PGLS u ekzekutuan për secilën prej 1000 pemëve kronograme, për të përfshirë pasigurinë filogjenetike dhe, në vijim, ne vlerësuam mesatarisht rezultatet e modelit 1000 të ponderuara sipas peshave të tyre Akaike. Ne kontrolluam që rezultatet mbetën identike nëse në vend të kësaj përdornim mesataren e modelit jo të peshuar. Ne raportojmë vlerat mesatare të peshës së koeficientëve të standardizuar të regresionit ( β st ), p dhe gjithashtu modelin λ . Ne kontrolluam që, në këto dhe të gjitha modelet e mëposhtme të PGLS, intervalet e ponderuara të besueshmërisë 95% të β st nuk përfshinin zero për efektet me vlera p -mesatare të peshës < 0,05, dhe përfshinin zero për efektet me p > 0,05. Për shkak se puna e mëparshme gjeti një korrelacion negativ midis dikromatizmit seksual dhe kompleksitetit të këngës nëpër finche karuelinë, ne i përsëritëm këto dy modele PGLS duke përdorur dikromatizmin seksual në gji (ngopje mashkull minus femër) në vend të ngopjes mashkullore.
Ne testuam nëse ngopja e ngjyrës së gjoksit mashkullor, diversiteti i rrokjeve ose devijimi vokal DQ parashikoheshin nga ndryshimet e specieve në madhësinë e trupit ose në densitetin e vegjetacionit të habitateve. Ashtu si në punën e mëparshme, ne përdorëm gjatësinë e trupit (pika e mesit nga vargjet në si masë e madhësisë sepse kjo masë është e disponueshme për të gjitha speciet dhe lidhet fort me masën e trupit dhe madhësinë e faturës, dhe morëm një rezultat e dendësisë së bimësisë për çdo specie nga, e cila kategorizonte vegjetacionin tipik të habitateve si 1-të hapur, 2-gjysmë të mbyllur ose 3-të mbyllura. Këto të dhëna jepen edhe në materialin plotësues elektronik. Ne përdorëm modele të shumëfishta regresioni PGLS me ngjyrën e gjoksit ose një tipar kënge si variabël të varur dhe, si parashikues, madhësinë e trupit dhe dendësinë e vegjetacionit. Së fundi, ne testuam përsëri për një lidhje midis diversitetit të rrokjeve ose devijimit vokal DQ dhe, si parashikues, ngjyrës së gjoksit mashkullor, por tani kontrollojmë për efektet e madhësisë së trupit dhe densitetit të vegjetacionit, duke i përfshirë ato si parashikues shtesë në modelin e regresionit të shumëfishtë PGLS.
3. Rezultatet
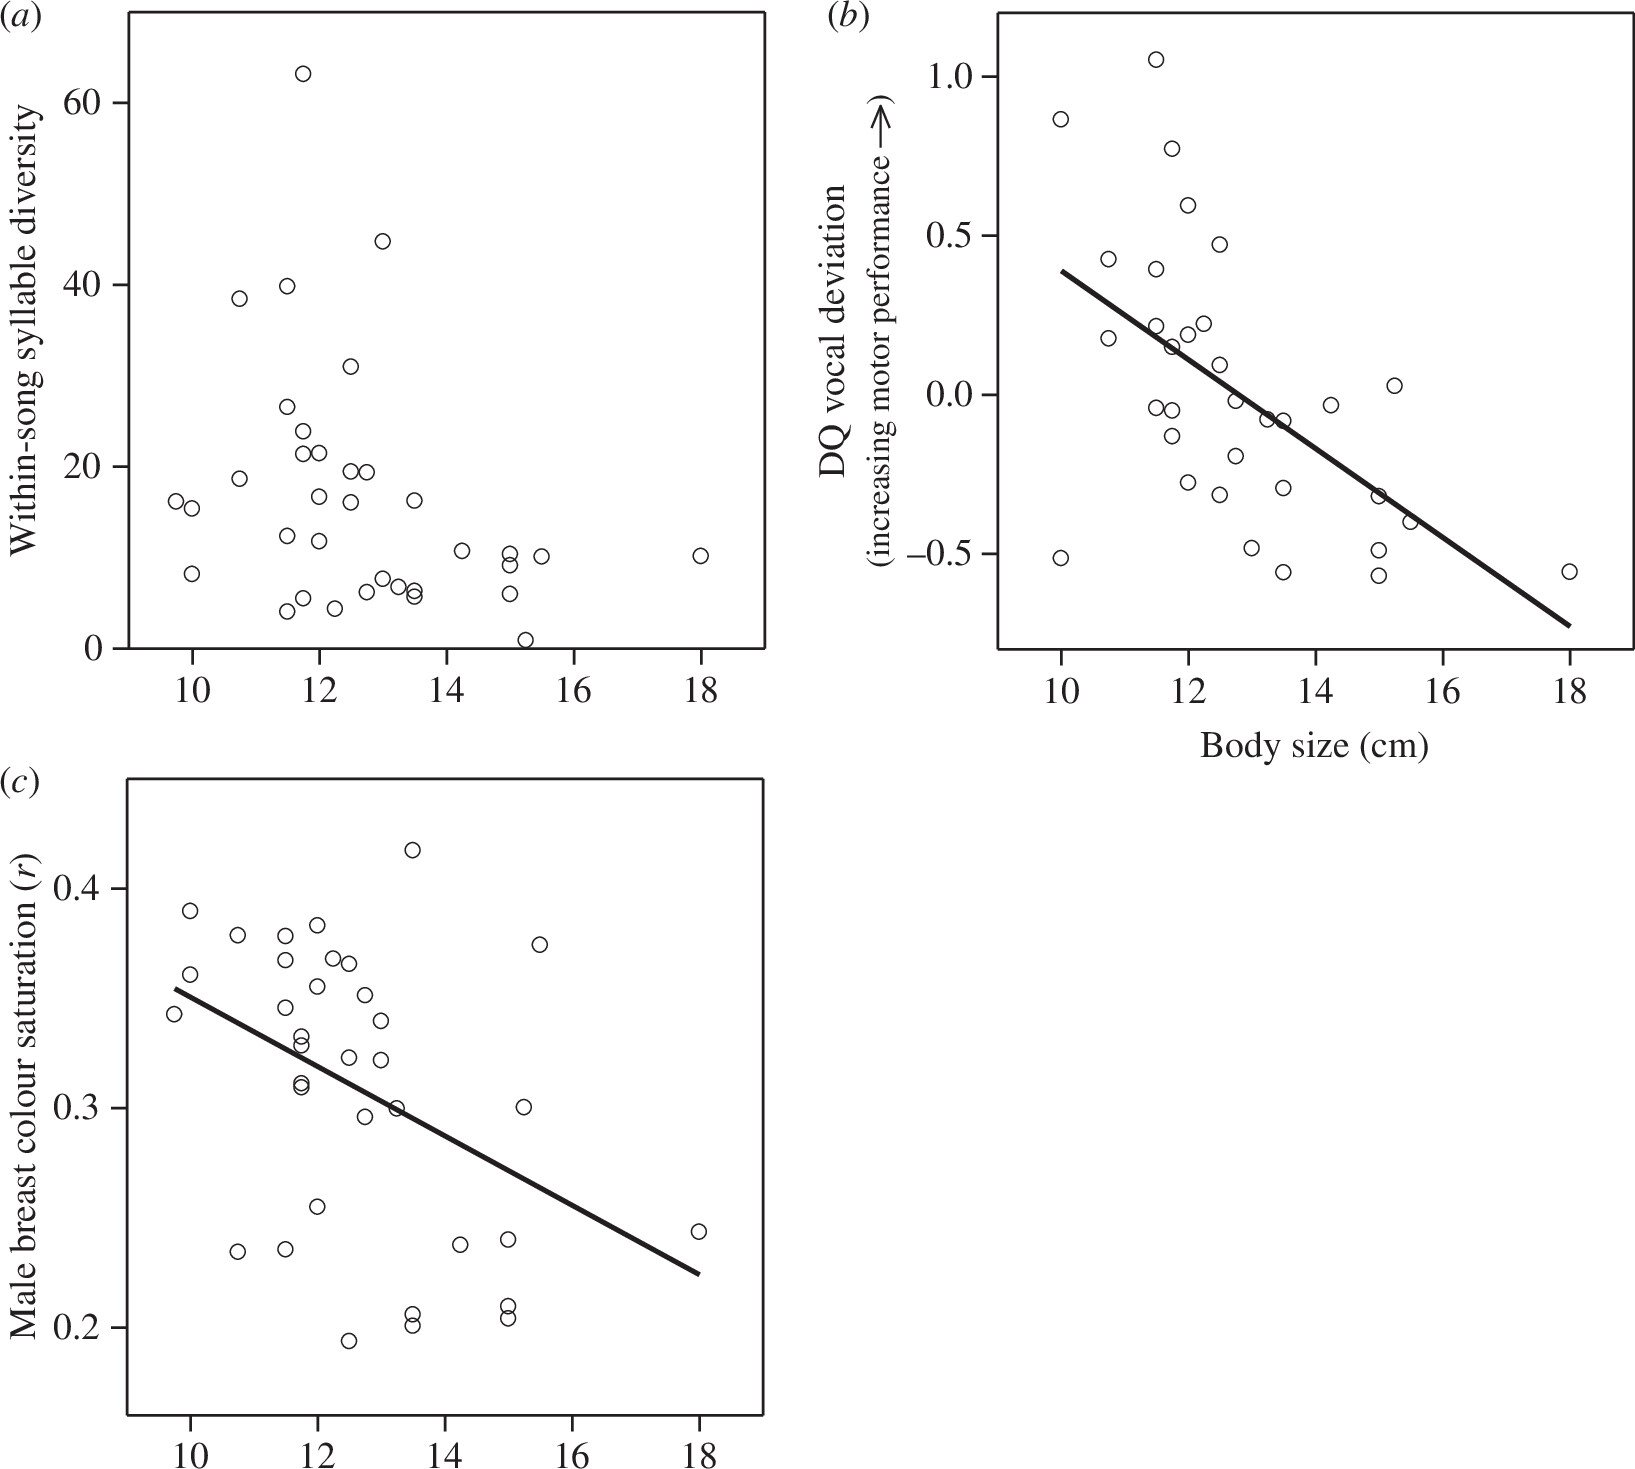
Figura 2. Shpërndarja për marrëdhëniet midis ( a ) diversitetit të rrokjeve brenda këngës, ( b ) performancës motorike të trillit (devijimi vokal DQ) ose ( c ) ngopjes së ngjyrave në pendën e gjirit dhe madhësisë së trupit (gjatësia, në cm). Vijat e ngurta tregojnë lidhje statistikisht të rëndësishme.
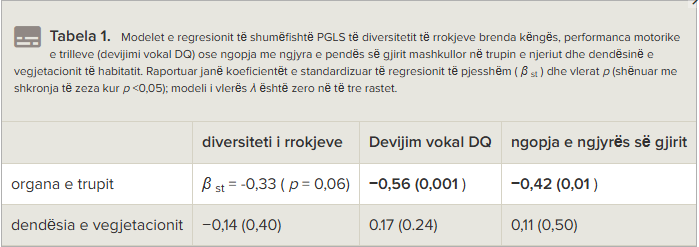
Tabela 1.
Modele regresioni të shumëfishtë PGLS të diversitetit të rrokjeve brenda këngës, performancës motorike të trilleve (devijimi vokal DQ) ose ngopjes së ngjyrave të pendës së gjirit mashkullor në madhësinë e trupit dhe densitetin e vegjetacionit të habitatit. Të raportuara janë koeficienti i standardizuar i regresionit të pjesshëm (β st) dhe vlera p (shënuar me shkronja të zeza kur p <0,05); modeli i vlerësuar λ është zero në të tre rastet.
Tabela 2.
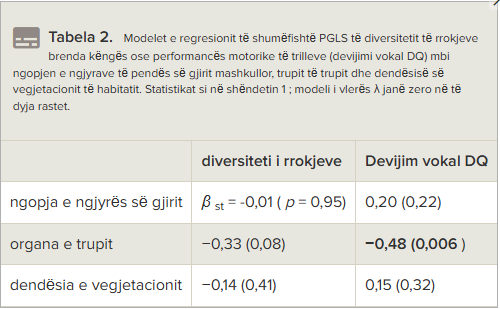 Modele regresioni të shumëfishtë PGLS të diversitetit të rrokjeve brenda këngës ose performancës motorike të trilleve (devijimi vokal DQ) mbi ngopjen e ngjyrave të pendës së gjoksit mashkullor, madhësinë e trupit dhe dendësinë e vegjetacionit të habitatit. Statistikat si në tabelën 1; modeli i vlerësuar λ janë zero në të dyja rastet.
4. Diskutim
Performanca e këngës dhe zbukurimi me ngjyra evoluan në korrelacion pozitiv me njëri-tjetrin te kanarinat, gardalinat dhe llojet e afërta me to; të dyja evoluan gjithashtu në korrelacion me madhësinë e trupit, por me gjasë për arsye të ndryshme. Në rastin e performancës së këngës, sqepat më të mëdhenj dhe më të rëndë mund të kufizojnë shpejtësinë e lëvizjeve të sqepit– të nevojshme për modulimin e frekuencës së zërit– duke çuar në ritme më të ngadalta trili ose në intervale frekuencash më të ngushta. Duke qenë se madhësia e trupit dhe ajo e sqepit janë në korrelacion të fortë te këto lloje të afërta me kanarinat, shpërndarja e përbashkët në formë trekëndëshi midis madhësisë së trupit dhe performancës së këngës – ku llojet më të vogla mund të këndojnë trili me performancë të ulët ose të lartë, ndërsa llojet më të mëdha këndojnë vetëm trili me performancë të ulët – sugjeron fuqimisht se madhësia kufizon performancën maksimale motorike (shih gjithashtu. Në rastin e ngjyrës, është më pak e qartë nëse madhësia e trupit në vetvete duhet të kufizojë zbukurimin, por shih edhe; megjithatë, te shpendët në përgjithësi, madhësia e trupit lidhet me disa tipare të ciklit jetësor dhe të sjelljes që mund ta dobësojnë seleksionimin seksual. Për shembull, madhësia e trupit shpesh tregon jetëgjatësi ose një madhësi relative më të madhe të trurit; të dyja këto karakteristika lidhen me një investim më të madh në lidhjet afatgjata çiftore dhe me një investim më të vogël në atësinë jashtë çiftit .
Përveç madhësisë së trupit, ne e konsideruam gjithashtu dendësinë e bimësisë së habitatit si një ndikim të mundshëm në evolucionin e sinjaleve, por ai nuk parashikoi ndryshimet e specieve në këngën ose tiparet e ngjyrave të studiuara këtu. Ne treguam më parë se speciet e kanarinave, fincave dhe aleatëve nga habitatet me bimësi më të dendur këndojnë më pak trill, me gjasë sepse përthyerja e shkaktuar nga vegjetacioni degradon strukturën kohore të sinjaleve akustike, por se dendësia e vegjetacionit nuk parashikon dallimet e specieve në diversitetin e rrokjeve të këngëve ose në aspektet më të imta të strukturës së trillit (norma e trillit, gjerësia e brezit të frekuencës dhe performanca e përgjithshme e motorit trill. Për zbukurimin e ngjyrave, dendësia e bimësisë ndikon në sasinë dhe llojin e dritës së ambientit dhe, në këtë mënyrë, mund të ndikojë në evolucionin e ngjyrave (shqyrtuar në. Për shembull, tek kafshatët Phylloscopus dhe tek femrat e vegjetacionit, dallimet e specieve në zbukurimin e ngjyrave parashikohen nga sasia e dritës në habitatin e tyre, e cila nga ana tjetër përcaktohet nga dendësia e vegjetacionit. Megjithatë, ndryshe nga ato specie, shumica dërrmuese e kanarinave, fincave dhe aleatëve nuk janë territorialë dhe ato bëjnë lëvizje të shpeshta endacakë për të gjetur fara që do të thotë se individët udhëtojnë dhe ndërveprojnë në habitate me bimësi të ndryshueshme, gjë që ndoshta shpjegon mungesën e shoqërimi me ngopjen e ngjyrave dekorative.
Ndryshe nga puna e mëparshme mbi finche carueline, ne nuk gjetëm prova për evolucionin e korreluar negativisht midis diversitetit të rrokjeve në këngë dhe ngopjes së ngjyrave zbukuruese ose dikromatizmit seksual. Korrelacionet negative midis evolucionit të zbukurimeve të shpendëve dhe përpunimit të sinjaleve akustike duket të jenë të rralla, pasi janë raportuar në vetëm tre studime. Së pari, Badyaev et al . gjeti një korrelacion negativ midis dikromatizmit seksual dhe një metrike të kompleksitetit të këngës që përfshin diversitetin e rrokjeve, në një kampion prej 33 finche karuelinë. Këtu, duke përdorur 35 të afërm të kanarinave, një nënkladë e finche karuelinë në vend të gjithë familjes, ne nuk mund ta konfirmonim këtë gjetje, duke treguar se evolucioni i lidhur negativisht i këngës dhe ngjyrës mund të mos jetë një fenomen i përgjithshëm brenda nënfamiljes Carduelinae. Së dyti, Beco et al . gjeti korrelacione negative midis aspekteve të kompleksitetit të këngës dhe, veçanërisht, ndriçimit të pendës dorsal në milingonat. Zbukurimi i ngjyrës së Antwren, megjithatë, bazohet në pendën e melanizuar të errët, me meshkujt zakonisht më të errët se femrat, kështu që ndriçimi i lartë shpesh mund të tregojë më pak se sa më shumë zbukurime. Së treti, Marcolin et al . gjeti evolucion të lidhur negativisht midis dikromatizmit seksual dhe aspekteve të ndryshme të kompleksitetit të thirrjes tek papagajtë.
Kjo mungesë shembujsh për evolucionin e korreluar negativisht midis zbukurimeve të ngjyrave të shpendëve dhe shtjellimit të sinjaleve akustike nuk do të thotë se e kundërta, evolucioni i lidhur pozitivisht, është një model i përgjithshëm. Përkundrazi, studimet e kaluara dhe rezultatet tona tregojnë se evolucioni i pakorreluar dhe i lidhur pozitivisht midis zbukurimeve të ngjyrave dhe aspekteve të përpunimit të sinjalit akustik janë të dyja të zakonshme tek zogjtë. Në vend të një modeli gjerësisht të zbatueshëm të evolucionit të ndërlidhur midis sinjaleve vizuale dhe akustike të shpendëve, ato që duket se ekzistojnë janë modele të ndryshme specifike të klasit të evolucionit të ndërlidhur. Një sfidë për të ardhmen është shpjegimi i këtyre dallimeve midis klaseve. Hipoteza se korrelacionet evolucionare midis sinjaleve seksuale janë kryesisht të kushtëzuara nga mënyra se si kufizimet dhe faktorët socioekologjikë që ndikojnë në secilin lloj sinjali shpërndahen në të gjithë speciet , mbështetet nga gjetja jonë se madhësia e trupit shpjegon evolucionin e ndërlidhur të performancës së këngës dhe ngjyrës në të afërmit kanarina. Kjo pikëpamje më kontingjente se si lidhen sinjalet seksuale mund të ndihmojë në kuptimin e modeleve evolucionare specifike të kladit.
Fusnotat
Materiali shtesë elektronik është i disponueshëm në internet në https://doi.org/10.6084/m9.figshare.c.7410609 .
© 2024 Autori(ët).
Botuar nga Shoqëria Mbretërore. Të gjitha të drejtat e rezervuara.